Physiologie de l’effort
VO₂max : ce qu’un seul chiffre ne vous dit pas
VO₂max résume ce que la chaîne de l’oxygène (poumons, cœur, sang, vaisseaux, capillaires, muscles et mitochondries) produit quand elle tourne à son maximum. Comprendre les rouages de ce système intégré permet de mieux identifier ce qu’il faut stimuler à l’entraînement pour faire “grimper” VO₂max.
La définition, on la connaît à peu près tous : VO₂max désigne le débit maximal d’oxygène que l’organisme peut utiliser pendant un effort maximal. En d’autres termes, c’est la quantité maximale d’oxygène qu’on est capable d’utiliser par minute. C’est un “plafond”, une limite au niveau de la consommation maximale d’oxygène que notre corps n’est pas capable de dépasser, quelle que soit l’intensité de l’effort physique. Cette limite varie fortement d’une personne à l’autre : elle est propre à chacun et dépend de nombreux facteurs. La bonne nouvelle : votre VO₂max est dynamique dans le sens où il peut évoluer au fil du temps. Il peut être modulé en partie grâce à un entraînement approprié qui stimule les différentes composantes sous-jacentes à VO₂max.
Mais au fond, que se cache-t-il vraiment derrière VO₂max ? VO₂max est en fait un marqueur qui intègre une réalité complexe… et le trajet débute dans l’air qui nous entoure. L’oxygène qui s’y trouve entre dans les poumons, traverse la paroi des alvéoles pour passer dans le sang, où l’hémoglobine le fixe. Le cœur propulse ce sang, les vaisseaux le répartissent vers les muscles actifs, et c’est dans les capillaires, les plus fins d’entre eux, que l’oxygène quitte le sang pour pénétrer dans la fibre musculaire. Là, les mitochondries, des petites structures spécialisées à l’intérieur des cellules, l’utilisent pour régénérer l’ATP (adénosine triphosphate), cette fameuse molécule dont la dégradation fournit l’énergie nécessaire à la contraction de nos cellules musculaires.
Le chiffre
VO₂max : le reflet de la sortie maximale d’un système intégré
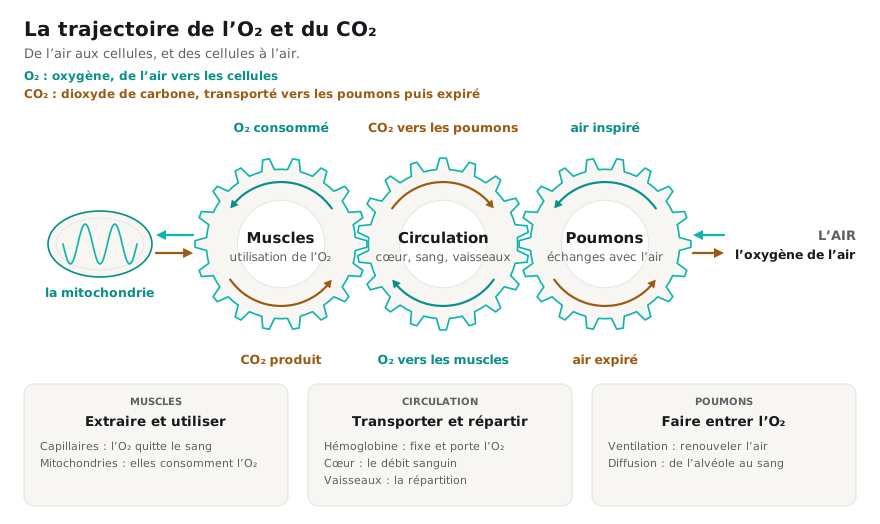
La valeur de VO₂max s’exprime généralement de deux manières différentes. La valeur absolue s’exprime en litres d’oxygène par minute alors que la valeur relative s’exprime, elle, en millilitres par kilogramme et par minute. Cette dernière expression rapporte le débit à la masse corporelle : elle peut donc changer avec le poids, sans modification du débit absolu. C’est souvent ce chiffre relatif que les athlètes aiment comparer entre eux.
Le gold standard pour déterminer VO₂max consiste en la réalisation d’un test d’effort avec analyse des gaz respirés. Un masque canalise l’air inspiré et l’air expiré ; l’appareil mesure le volume d’air qui passe et les teneurs en oxygène et en dioxyde de carbone dans cet air. La différence entre ce qui entre et ce qui sort permet de déterminer l’oxygène réellement consommé et le dioxyde de carbone réellement produit. On observe donc le résultat global de la chaîne (poumons, cœur, sang, vaisseaux, capillaires, muscles et mitochondries ensemble) et non le travail de l’un de ces maillons pris séparément [2].
Lors d’un test d’effort progressif, la consommation d’oxygène augmente avec l’intensité, de manière à alimenter les mitochondries en O₂ de plus en plus pour qu’elles puissent répondre en partie à l’augmentation de la demande énergétique. Lorsque l’effort est maximal (et même un peu avant en réalité), on peut observer un phénomène de saturation : un plateau au niveau de cette consommation d’oxygène. On arrive alors à la limite de ce que le corps est capable de consommer par minute : VO₂max.
Cela étant dit, lors d’un test d’effort, le caractère maximal n’est pas toujours assuré : on doit donc pouvoir estimer si l’effort était bel et bien maximal. De manière rigoureuse, on doit en principe parler de VO₂peak lors d’un test d’effort, car il n’y a jamais de certitude que le corps ait bien atteint son maximum absolu en termes de consommation d’oxygène : VO₂max. Dans la pratique, si différents critères sont remplis (ce qui doit être analysé en détail), on peut alors raisonnablement supposer que VO₂peak reflète bien VO₂max. Par mesure de prudence et par honnêteté intellectuelle, on devrait toujours mentionner VO₂peak ou, dans tous les cas, nuancer ce qu’on appelle VO₂max [2,19].
Plusieurs choses nourrissent l’incertitude sur le fait d’atteindre réellement VO₂max.
- L’effort lui-même. Un test ne se prolonge pas toujours jusqu’à l’échec. Il peut s’arrêter parce que la personne le décide (motivation pas au rendez-vous, tolérance à l’inconfort ou gêne locale). L’effort peut donc être interrompu avant d’atteindre ce fameux plafond.
- La modalité. En fonction de la modalité utilisée, la masse musculaire engagée pendant l’effort n’est pas la même. Il en résulte que la consommation d’oxygène ne l’est pas non plus. Une même personne peut donc présenter des valeurs maximales différentes selon la modalité adoptée pour le test : souvent plus basses à vélo qu’en course à pied [12]. Le choix de la modalité est déterminant quand on teste un athlète : à défaut, on obtient des repères qui perdent beaucoup de leur sens une fois transposés à une autre modalité.
- Le protocole. La façon dont la charge monte compte aussi. Sur ergocycle, le protocole peut aussi influencer la valeur mesurée, par exemple une rampe, où la résistance augmente en continu, ou un test par paliers. Dans une étude menée par Michalik et al. [18], 57 jeunes cyclistes sur route (des hommes, âge moyen 17 ans) ont passé les deux tests à une semaine d’intervalle, dans un ordre tiré au sort : la rampe a donné en moyenne 65,8 mL·kg⁻¹·min⁻¹, contre 64,3 pour les paliers. La différence est faible mais cela suffit à rappeler que la valeur mesurée dépend aussi de la façon dont on a conduit l’épreuve.
- Les critères ne sont pas neutres. Pour juger qu’un test est allé assez loin, on s’appuie sur un faisceau d’indices : le rapport entre le dioxyde de carbone rejeté et l’oxygène consommé (le fameux RER, Respiratory Exchange Ratio), la fréquence cardiaque, le lactate sanguin, la perception de l’effort (le fameux RPE, Rating of Perceived Exertion). Aucun ne suffit seul, et les seuils retenus doivent tenir compte de différents facteurs tels que l’âge et le sexe [2,14].
- Le plateau n’est pas toujours observé. Dans une étude menée par Day et al. [19], 71 hommes de 19 à 61 ans ont réalisé un test en rampe sur ergocycle, jusqu’à la limite de ce qu’ils pouvaient tolérer. Un plateau n’a été observé que chez 12 d’entre eux ; chez tous les autres, la consommation d’oxygène a continué de monter jusqu’à l’arrêt du test. L’absence de plateau ne prouve pourtant pas que le maximum n’a pas été atteint : dans cette même étude, 38 participants ont réalisé, un autre jour, un effort à charge constante à environ 90 % en moyenne de la puissance de pointe atteinte en rampe, jusqu’à la limite de tolérance, et leur valeur de pointe était la même qu’en rampe. Six d’entre eux ont réalisé en plus plusieurs efforts à charge constante, tous à très haute intensité (au-delà du niveau où la consommation d’oxygène peut encore se stabiliser), mais à des charges différentes. Quelle que soit la charge, leur consommation d’oxygène plafonnait à la même valeur (un plateau, cette fois bien visible), et cette valeur était celle atteinte en fin de rampe [19]. C’est le principe de l’épreuve de vérification, surtout utilisée en recherche : un second effort à charge constante, mené jusqu’à la limite de tolérance, le plus souvent le jour même après 1 à 90 minutes de récupération et au-dessus de la puissance de pointe du test. Dans une méta-analyse réunissant 54 études, Costa et al. [15] ne trouvent en moyenne qu’une différence de 0,03 L/min avec le test. Autrement dit, quand les autres indicateurs du faisceau vont dans le même sens, on peut raisonnablement se passer d’un vrai plateau [2,19].
Une équation utile
L’équation de Fick, terme par terme
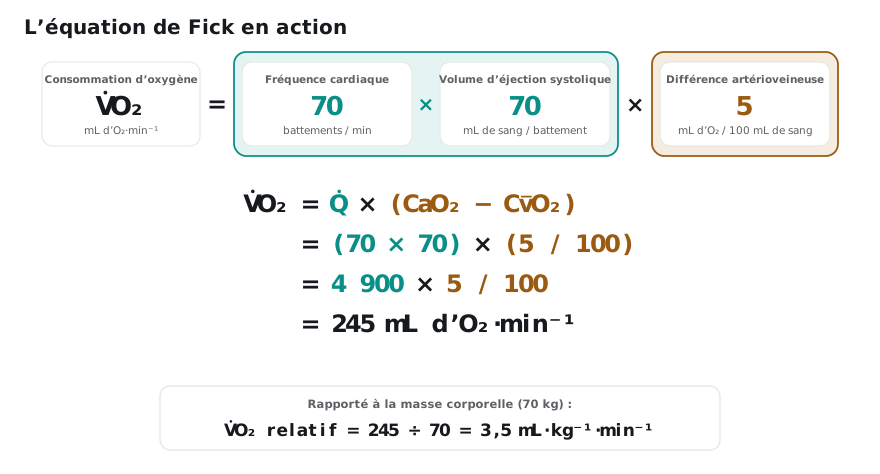
L’équation de Fick permet de mieux comprendre ce qui constitue la consommation d’oxygène par unité de temps (par minute, le plus souvent) et de quoi elle dépend :
VO₂ = Q × (CaO₂ − CO₂)
Cette équation nous dit que la consommation d’oxygène par minute, VO₂, dépend directement du débit cardiaque, Q, et de l’oxygène extrait par nos cellules dans chaque litre de sang, (CaO₂ − CO₂).
- Q, le débit cardiaque, est simplement le volume de sang pompé par minute par le cœur. Il dépend de la fréquence cardiaque (le nombre de battements par minute) et du volume de sang éjecté à chaque battement.
- CaO₂ représente le contenu artériel en oxygène, c’est-à-dire la quantité d’oxygène présente dans un litre de sang artériel : celui que le ventricule gauche envoie dans l’aorte, vers les tissus.
- CO₂ représente le contenu en oxygène du sang veineux mêlé (la barre sur le v signifie “moyen”), c’est-à-dire le sang qui revient de l’ensemble des organes par les veines, se mélange dans le cœur droit et repart vers les poumons par l’artère pulmonaire.
Et donc leur différence, (CaO₂ − CO₂), dite artérioveineuse, représente l’oxygène prélevé par nos cellules dans chaque litre de sang, à l’échelle du corps entier, en prenant en compte l’ensemble des tissus (pas uniquement les muscles actifs).
Prenons un exemple concret pour calculer VO₂ en utilisant l’équation de Fick. Supposons une personne de 70 kg, au repos : son cœur bat 70 fois par minute et éjecte 70 mL de sang à chaque battement (volume systolique) et ses tissus prélèvent 5 mL d’oxygène dans chaque 100 mL de sang : c’est sa différence artérioveineuse.
Plus au fond
Un cran plus bas : les ingrédients de chaque terme
L’équation de Fick ne compte que deux termes : le débit cardiaque et la différence artérioveineuse. Chacun dépend à son tour de plusieurs ingrédients. Reprenons-les dans l’ordre.
Le débit cardiaque (Q)
Les deux facteurs (fréquence cardiaque et volume de sang éjecté à chaque battement) qui le constituent n’obéissent pas aux mêmes règles. La fréquence cardiaque maximale dépend surtout de l’âge et ne s’entraîne pas : l’entraînement en endurance ne l’augmente pas, elle aurait même plutôt tendance à baisser [16]. Ce qui s’entraîne, c’est le volume d’éjection systolique : la quantité de sang que le ventricule gauche envoie vers les tissus à chaque battement. Il augmente avec un entraînement adéquat [6] et c’est lui qui distingue d’abord les athlètes des non-athlètes [4].
Combien de sang le ventricule peut-il envoyer à chaque battement ? Cela dépend d’abord de la quantité de sang qu’il contient juste avant de se contracter, c’est-à-dire de son remplissage. Celui-ci dépend du retour du sang vers le cœur, de la rapidité avec laquelle le ventricule se relâche entre deux battements et de sa souplesse, ainsi que de celle du péricarde qui l’entoure. Un volume sanguin plus grand pourrait aussi faciliter ce remplissage [11]. Le volume éjecté dépend aussi de la force de contraction (la contractilité, que la stimulation nerveuse augmente à l’effort [10]) et de la pression qui règne dans les artères, contre laquelle le cœur doit pousser le sang. Ce qui distingue les athlètes n’est pourtant pas la contractilité, mais un ventricule plus souple, qui se relâche plus vite et se remplit davantage : il peut donc en renvoyer davantage à chaque battement [4].
Quand l’effort monte, le volume d’éjection ne suit pas la même courbe chez tout le monde. On a longtemps admis qu’il cesse d’augmenter vers 40 à 50 % de VO₂max [10,11], sur la foi d’études anciennes, menées sur peu de sujets et à deux ou trois intensités seulement : trop peu de points pour tirer une conclusion générale solide. En réalité, la réponse varie beaucoup d’une personne à l’autre : chez certains, le volume d’éjection plafonne, voire redescend, bien avant l’effort maximal ; chez d’autres, il continue d’augmenter jusqu’à VO₂max, comme le montrent les travaux rassemblés par Vella et Robergs [11]. Le niveau, l’âge, le sexe, la génétique : l’explication est multifactorielle.
La différence artérioveineuse (CaO₂ − CO₂)
Elle se lit en deux temps : ce que le sang artériel en provenance du ventricule gauche apporte aux tissus (CaO₂), puis ce que les tissus en retirent, qui détermine ce qu’il en reste au retour (CO₂).
Ce que le sang apporte : le contenu artériel en oxygène, CaO₂. L’oxygène du sang est presque entièrement porté par l’hémoglobine (Hb), une protéine contenue dans les globules rouges qui fixe l’oxygène :
CaO₂ ≈ 1,34 × [Hb] × SaO₂, plus une petite fraction dissoute dans le plasma
Dans l’expression ci-dessus, [Hb] représente la concentration d’hémoglobine, en grammes par litre, et 1,34 correspond au nombre de millilitres d’oxygène que porte un gramme d’hémoglobine [10]. Quant à SaO₂, c’est la saturation artérielle, à savoir la part de cette hémoglobine réellement chargée en oxygène ; elle dépend de la ventilation et de la diffusion de l’oxygène des alvéoles vers le sang [3]. Le plasma, lui, ne dissout qu’environ 3 mL d’oxygène par litre, quand 100 mL de sang complet en portent environ 20 mL, un peu moins chez la femme [10]. Ce qui compte n’est donc pas seulement la concentration d’hémoglobine mais sa quantité totale en circulation, qui dépend aussi du volume sanguin, c’est-à-dire la quantité totale de sang qui circule dans le corps : quantité totale d’hémoglobine = [Hb] × volume sanguin.
Ce que les tissus en retirent : l’extraction. Pour que l’oxygène soit prélevé, il faut d’abord que le sang arrive aux fibres qui travaillent, ces cellules allongées qui composent le muscle. À l’effort, le sang est redistribué : les artérioles, ces petites artères qui alimentent les muscles actifs, se dilatent, tandis que celles des autres organes se resserrent. Au repos, les muscles reçoivent 15 à 20 % du débit cardiaque ; lors d’un effort intense, cela peut monter jusqu’à 90 % [10]. Ce qui compte n’est pas seulement la quantité de sang qui arrive au muscle, mais que ce sang aille bien aux fibres qui consomment l’oxygène. Une expérience rapportée par Heinonen [16] l’illustre : à l’effort maximal, des chercheurs ont injecté dans l’artère de la jambe le plus puissant vasodilatateur connu, pour forcer l’ouverture des vaisseaux. VO₂max n’a pas augmenté. La part de l’oxygène extraite a même diminué : les vaisseaux se sont aussi ouverts vers des fibres qui ne travaillaient pas. L’apport de sang ne correspondait plus aussi précisément aux besoins des fibres actives [16].
Il faut ensuite que l’oxygène passe du sang à la fibre. Au bout des artérioles, le sang circule dans les capillaires, les vaisseaux les plus fins, qui entourent chaque fibre. L’oxygène y quitte les globules rouges, traverse la paroi du capillaire puis gagne la fibre : c’est la diffusion, d’autant plus facile que le réseau capillaire est dense, que la surface d’échange est grande et que la distance jusqu’au cœur de la fibre est courte, ce qui dépend de sa taille [17]. À l’intérieur de la fibre, deux éléments prennent le relais [17] : la myoglobine, une protéine proche de l’hémoglobine qui fixe l’oxygène et l’aide à cheminer jusqu’aux mitochondries, et la capacité oxydative de ces mitochondries, c’est-à-dire la quantité d’oxygène qu’elles sont capables d’utiliser. Et le passage ne s’arrête pas, parce que les mitochondries consomment l’oxygène à mesure qu’il arrive : la pression en oxygène reste plus basse dans la fibre que dans le capillaire. C’est cet écart qui le fait entrer [5].
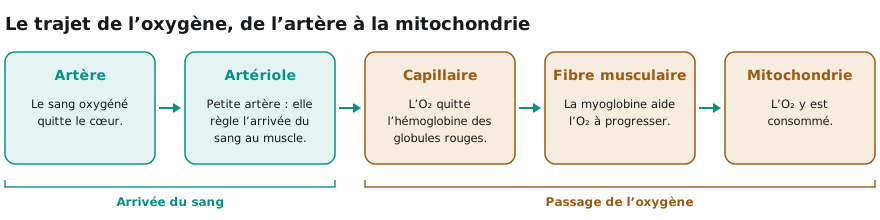
La différence artérioveineuse dépend donc à la fois du contenu artériel, de la répartition du débit (vers les muscles actifs, puis vers les fibres qui travaillent), de la diffusion et des mitochondries : ce n’est pas une mesure isolée de la qualité des muscles.
Limites et leviers
Les identifier pour progresser
Les limites sont les maillons qui plafonnent VO₂max à un moment donné. Ce plafond n’est pas figé : la limite qui pèse le plus change selon le type d’exercice, le niveau d’entraînement, l’état de santé et les conditions environnementales comme l’altitude, où la pression barométrique diminue et, avec elle, la pression partielle d’oxygène inspiré (hypoxie hypobare). L’acheminement de l’oxygène joue souvent un rôle majeur quand beaucoup de muscles travaillent, sans que les poumons ou les muscles soient pour autant secondaires [3,4,5,16]. Une mesure des échanges gazeux (la formule PEAK de Twin Peak Lab) éclaire ce fonctionnement global, mais VO₂max seul ne dit pas où se situe la limite dans la chaîne : la localiser demande d’autres mesures [2,3].
Les leviers sont ce sur quoi l’entraînement peut agir : desserrer une limite quand elle est entraînable (la fréquence cardiaque maximale, par exemple, ne l’est pas), ou renforcer un point déjà fort. Quand une limite est desserrée, une autre prend le relais. Et l’entraînement ne travaille jamais un seul maillon : le volume d’éjection, le réseau capillaire et le contenu en mitochondries progressent ensemble, à des rythmes différents ; leur poids varie avec l’âge, le niveau de départ et la durée de l’effort [6,7,8,16]. Renforcer un seul maillon ne suffit d’ailleurs pas : dans le modèle mathématique développé par Wagner [3], on observe que dégrader un seul maillon fait nettement chuter VO₂max, alors que l’améliorer d’une ampleur comparable ne le fait presque pas monter. L’idée est donc d’actionner ces leviers de manière coordonnée, pour se rapprocher du VO₂max que chacun peut atteindre compte tenu de son potentiel.
Votre montre
Vous comprenez maintenant pourquoi votre montre peut se tromper
Estimer VO₂max, ce système intégré qui fait intervenir tant de composantes, semble bien difficile à partir des seuls profils de fréquence cardiaque et de charge externe, c’est-à-dire la puissance ou la vitesse. La montre ne mesure pas les échanges gazeux : elle ne voit ni le volume d’éjection ni ce que les muscles extraient. L’erreur peut donc être importante d’une personne à l’autre [9], c’est pourquoi il est crucial de mesurer VO₂max via la mesure des échanges gazeux (la formule PEAK de Twin Peak Lab) si c’est un paramètre important à connaître pour vous.
Dans le prochain article, nous décortiquerons comment stimuler en pratique les différentes composantes de ce système intégré. Pour ne pas le manquer, abonnez-vous à la newsletter.
Dr Arnaud Collet, CPSS®
Références (19)
[1] Wasserman K, Van Kessel AL, Burton GG. Interaction of physiological mechanisms during exercise. J Appl Physiol. 1967;22(1):71–85. doi:10.1152/jappl.1967.22.1.71
[2] Glaab T, Taube C. Practical guide to cardiopulmonary exercise testing in adults. Respir Res. 2022;23:9. doi:10.1186/s12931-021-01895-6
[3] Wagner PD. Determinants of maximal oxygen consumption. J Muscle Res Cell Motil. 2023;44(2):73–88. doi:10.1007/s10974-022-09636-y
[4] Levine BD. VO₂max: what do we know, and what do we still need to know? J Physiol. 2008;586(1):25–34. doi:10.1113/jphysiol.2007.147629
[5] Cardinale DA, Larsen FJ, Jensen-Urstad M, Rullman E, Søndergaard H, Morales-Alamo D, Ekblom B, Calbet JAL, Boushel R. Muscle mass and inspired oxygen influence oxygen extraction at maximal exercise: role of mitochondrial oxygen affinity. Acta Physiol. 2019;225:e13110. doi:10.1111/apha.13110
[6] Rosenblat MA, Granata C, Thomas SG. Effect of interval training on the factors influencing maximal oxygen consumption: a systematic review and meta-analysis. Sports Med. 2022;52(6):1329–1352. doi:10.1007/s40279-021-01624-5
[7] Mølmen KS, Almquist NW, Skattebo Ø. Effects of exercise training on mitochondrial and capillary growth in human skeletal muscle: a systematic review and meta-regression. Sports Med. 2025;55:115–144. doi:10.1007/s40279-024-02120-2
[8] Spina RJ, Ogawa T, Kohrt WM, Martin WH III, Holloszy JO, Ehsani AA. Differences in cardiovascular adaptations to endurance exercise training between older men and women. J Appl Physiol. 1993;75(2):849–855. doi:10.1152/jappl.1993.75.2.849
[9] Molina-García P, Notbohm HL, Schumann M, Argent R, Hetherington-Rauth M, Stang J, Bloch W, Cheng S, Ekelund U, Sardinha LB, Caulfield B, Brønd JC, Grøntved A, Ortega FB. Validity of estimating the maximal oxygen consumption by consumer wearables: a systematic review with meta-analysis and expert statement of the INTERLIVE Network. Sports Med. 2022;52:1577–1597. doi:10.1007/s40279-021-01639-y
[10] Haff GG, Triplett NT, éditeurs. Essentials of Strength Training and Conditioning. 5e édition. National Strength and Conditioning Association. Human Kinetics; 2026.
[11] Vella CA, Robergs RA. A review of the stroke volume response to upright exercise in healthy subjects. Br J Sports Med. 2005;39:190–195. doi:10.1136/bjsm.2004.013037
[12] Hanson NJ, Scheadler CM, Lee TL, Neuenfeldt NC, Michael TJ, Miller MG. Modality determines VO₂max achieved in self-paced exercise tests: validation with the Bruce protocol. Eur J Appl Physiol. 2016;116:1313–1319. doi:10.1007/s00421-016-3384-0
[13] Sietsema KE, Sue DY, Stringer WW, Ward SA. Wasserman & Whipp’s Principles of Exercise Testing and Interpretation: Including Pathophysiology and Clinical Applications. 6e édition. Wolters Kluwer; 2021.
[14] Edvardsen E, Hem E, Anderssen SA. End criteria for reaching maximal oxygen uptake must be strict and adjusted to sex and age: a cross-sectional study. PLoS One. 2014;9(1):e85276. doi:10.1371/journal.pone.0085276
[15] Costa VAB, Midgley AW, Carroll S, Astorino TA, de Paula T, Farinatti P, Cunha FA. Is a verification phase useful for confirming maximal oxygen uptake in apparently healthy adults? A systematic review and meta-analysis. PLoS One. 2021;16(2):e0247057. doi:10.1371/journal.pone.0247057
[16] Heinonen I. Cardiac output limits maximal oxygen consumption, but what limits maximal cardiac output? Exp Physiol. 2025;110(5):666–674. doi:10.1113/EP091594
[17] van der Zwaard S, Brocherie F, Jaspers RT. Under the hood: skeletal muscle determinants of endurance performance. Front Sports Act Living. 2021;3:719434. doi:10.3389/fspor.2021.719434
[18] Michalik K, Danek N, Zatoń M. Comparison of the ramp and step incremental exercise test protocols in assessing the maximal fat oxidation rate in youth cyclists. J Hum Kinet. 2021;80:163–172. doi:10.2478/hukin-2021-0104. Ces valeurs y sont reprises des mêmes auteurs : J Sports Med Phys Fitness. 2019;59(8):1285–1291.
[19] Day JR, Rossiter HB, Coats EM, Skasick A, Whipp BJ. The maximally attainable VO₂ during exercise in humans: the peak vs. maximum issue. J Appl Physiol. 2003;95(5):1901–1907. doi:10.1152/japplphysiol.00024.2003